
李龙研究组与合作者|PNAS揭示线粒体蛋白外膜转位TOM复合物演化的结构基础
线粒体是真核细胞中重要的细胞器,参与能量代谢、细胞稳态等多种生命活动。线粒体中绝大多数蛋白质由细胞核编码,在细胞质中合成后,经蛋白质转位系统进入线粒体。其中,大多数前体蛋白由线粒体外膜上的TOM(Translocase of Outer Membrane)复合物介导跨膜转位。以往相关研究主要集中于酵母和哺乳动物,而对其他真核生物谱系的线粒体外膜蛋白质转位系统的了解相对有限。
布氏锥虫(Trypanosoma brucei)与酵母和哺乳动物亲缘关系较远,其线粒体蛋白外膜转位主要由ATOM(Atypical Translocase of the Outer Membrane)复合物介导。ATOM复合物与经典TOM复合物的功能相似,但亚基组成明显不同,两者是否采用相似的转位机制仍不清楚。因此ATOM复合物为研究线粒体蛋白质转位机器的起源和演化提供了独特的研究体系。
近日,北京大学生命科学学院、北大‑清华生命科学联合中心李龙研究组与中山大学生命科学学院赖德华研究组合作,发表题为“Structural Insights into the Evolution of Mitochondrial Protein Import from the Trypanosome ATOM Complex”的研究论文。
研究团队从布氏锥虫中纯化了内源ATOM复合物,并利用冷冻电镜获得了分辨率为2.82 Å的二聚体结构。在这个二聚体中,两个ATOM40通道相对排列,其余亚基围绕在通道周围。这样的排布与经典TOM复合物相似,表明核心通道架构在这两类转位复合物中得以保留(图1)。另外,除了此前已知的七种亚基,研究人员还在密度图中发现了一个此前未被识别的亚基,结合结构建模和质谱分析,将其命名为ATOM5。
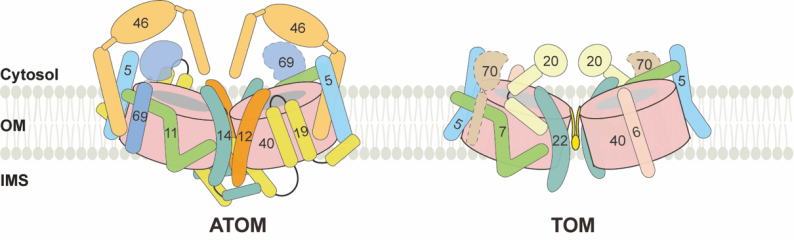
图1. 布氏锥虫ATOM(左)与经典TOM(右)复合物的结构示意图。两者具有相似的二聚体通道架构,结构差异主要体现在胞质侧的受体区和膜间隙侧的外围区域。
仅靠序列比对,过去很难在ATOM和TOM之间找到相互对应的小亚基。但冷冻电镜结构显示,ATOM11与酵母Tom7在通道外侧的结合位置一致,且两者都具有特征性的V形构象,提示ATOM11可能是序列已明显分化的Tom7同源蛋白。新发现的ATOM5也位于酵母Tom5的对应位置,结构和序列上的相似性表明两者的同源性。这些结果提示,Tom5和Tom7可能在早期线粒体外膜转位复合物中就已存在,这为重新认识TOM复合物的亚基起源及其演化历程提供了新的依据。
此外,研究人员在ATOM40通道内观察到一段来自其C端亲和纯化标签的多肽。这段标签肽沿通道内壁延伸,在结构上模拟了转位底物。它在通道中的走向与酵母Tom40中前体蛋白的转位路径相互重叠,提示不同真核生物的线粒体外膜通道可能保留了相似的蛋白质转位路径。
ATOM与经典TOM的结构差异主要体现在受体和膜间隙区域,但这些外围区域在功能上仍有相似之处。两类复合物的受体识别相似的底物,而ATOM独特的膜间隙侧结构也可能像TOM的对应区域一样,促进前体蛋白从通道中释放。这些发现提示,不同真核生物谱系的线粒体蛋白质转位系统可能通过趋同演化,形成了结构各异但功能相似的外围区域。
综上所述,该研究解析了布氏锥虫ATOM复合物的高分辨率结构,揭示了线粒体外膜蛋白质转位机器在进化过程中高度保守的核心架构和蛋白质转位路径,重新界定了TOM小亚基的演化起源,并揭示了受体区域和膜间隙区域的多种趋同演化现象。该工作为理解原始线粒体蛋白质转位复合物的组成,以及现代真核生物中不同蛋白质转位系统如何在保持基本功能的同时发生结构分化,提供了重要的结构基础。
北京大学生命科学学院、北大‑清华生命科学联合中心李龙研究员和中山大学生命科学学院赖德华教授为论文共同通讯作者,北京大学生命科学学院王珊珊和中山大学生命科学学院张从曦为论文共同第一作者。蔡鸿骏博士参与了结构解析工作,滕梦鹿硕士协助前期细胞系构建,杨玉琪博士参与了冷冻电镜样品制备。北京大学冷冻电镜平台、高性能计算平台、质谱平台及北京大学国家蛋白质科学中心为该研究提供了重要支持。
原文链接:
www.pnas.org/doi/10.1073/pnas.2622689123